表观组学
解析非序列层面的遗传修饰规律,探索环境如何通过修饰影响基因表达。
WGBS
全基因组甲基化(Whole-Genome Bisulfite Sequencing, WGBS)是目前研究DNA甲基化最全面、分辨率最高的方法之一,广泛应用于表观遗传学、发育生物学、肿瘤学等领域。DNA甲基化是真核生物中最常见的表观遗传修饰形式,主要发生在CpG二核苷酸中的胞嘧啶5'位碳原子上,形成5-甲基胞嘧啶(5mC)。这种修饰在不改变DNA序列的前提下调控基因表达,参与细胞分化、X染色体失活、印记基因调控、转座子沉默等关键生物学过程。异常的甲基化模式与多种疾病(如癌症、神经退行性疾病、自身免疫病)密切相关。传统甲基化检测方法(如甲基化特异性PCR、MeDIP)存在覆盖度低或分辨率不足的问题。而WGBS通过亚硫酸氢盐(bisulfite)处理结合高通量测序,可实现单碱基分辨率、全基因组范围的甲基化图谱绘制。
原理介绍
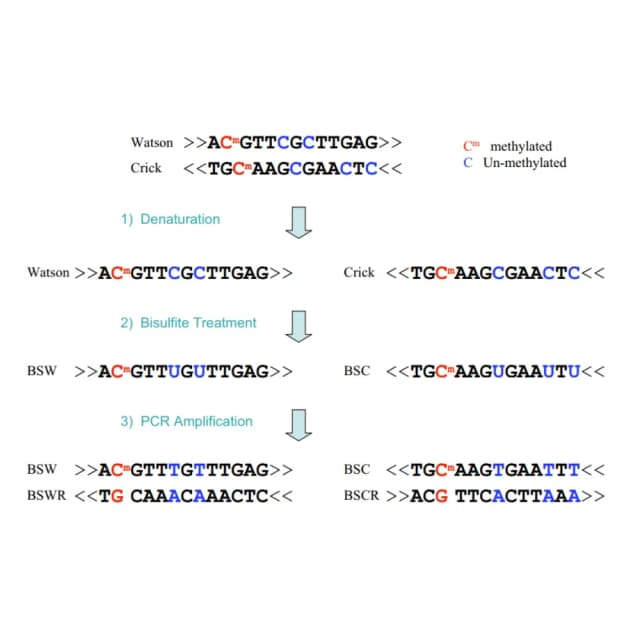
全基因组甲基化核心原理是亚硫酸氢盐(sodium bisulfite)可将未甲基化的胞嘧啶(C)脱氨基转化为尿嘧啶(U),在后续PCR扩增中被读作胸腺嘧啶(T);而甲基化的胞嘧啶(5mC)对亚硫酸氢盐具有抗性,保持不变。通过比对原始参考基因组与测序结果中C→T的转换情况,即可判断每个C位点是否甲基化。
文献案例
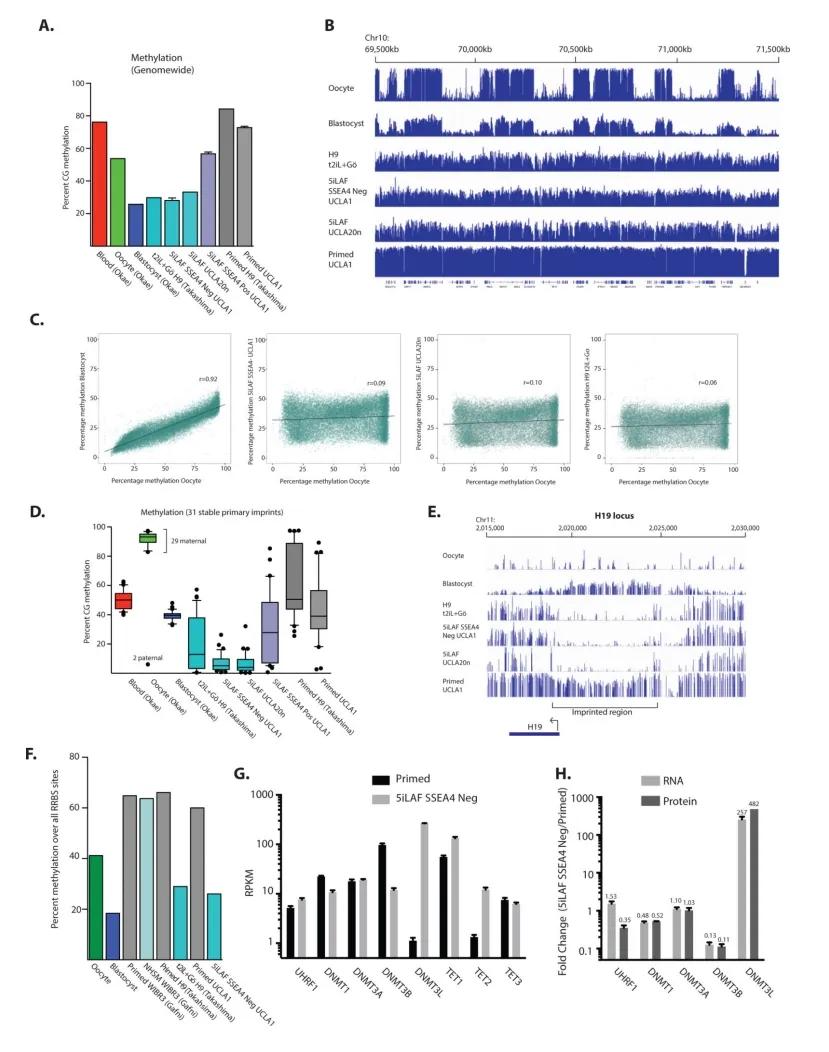
《Cell Stem Cell》期刊上发表"Naïve human pluripotent cells feature a methylation landscape devoid of blastocyst or germline memory. "研究论文,利用全基因组亚硫酸氢盐测序(WGBS)系统比较了在5iLAF或t2iL+Gö等naïve培养条件下获得的人胚胎干细胞(hESCs)与体内人类囊胚、卵母细胞及primed hESCs之间的DNA甲基化图谱。研究发现,尽管naïve hESCs在转录组上高度模拟人类着床前上胚层(如高表达KLF家族、NANOG,低表达OTX2、ZIC家族),并呈现整体低甲基化状态(平均CG甲基化水平接近囊胚),但其甲基化景观却显著偏离体内真实naïve状态:不仅无法重建母源“瞬时印记”(transient maternal imprints)的甲基化模式,更在全部31个稳定原发性印记控制区(如H19、SNRPN)发生近乎完全的甲基化丢失,导致印记基因由单等位表达转为双等位表达;此外,naïve hESCs的甲基化图谱与人类MII期卵母细胞和囊胚的相关性极弱,表明体外培养过程彻底抹除了配子与早期胚胎的“甲基化记忆”。机制上,作者揭示naïve状态下DNMT1/UHRF1维持甲基化通路被抑制,同时TET1/2氧化酶表达显著上调,共同驱动了全局性去甲基化与印记擦除。该研究首次系统揭示当前naïve重编程策略虽可实现转录层面的“返祖”,却无法忠实复现体内表观遗传蓝图,对naïve hESC在疾病建模与再生医学中的应用提出了重要警示。
送样标准
提供 ≥2 μg 纯净DNA,去除RNA及蛋白残留;浓度 ≥20 ng/μL,基于Qubit定量;建议使用新鲜组织或从新鲜组织中提取的DNA。
取样量不少于10–30 mg(约绿豆至黄豆大小),离体后立即用生理盐水清洗,吸干表面水分,冰上分割成小块,液氮速冻,-80℃保存。避免使用RNAlater、TRIzol或酒精等试剂保存。
提供不少于2×10⁶个细胞。贴壁细胞需先消化收集,悬浮细胞可直接处理;用PBS洗涤一次,600g离心5分钟,弃上清保留沉淀;液氮速冻,-80℃保存。
哺乳类动物:≥2 mL外周血;红细胞有核物种:≥0.5 mL。采集于EDTA抗凝管中,避免肝素管;液氮速冻,-80℃保存。不接受RNAlater、TRIzol或酒精保存。
提供不少于15张切片,组织面积≥1 cm²,厚度4–10 μm;肿瘤细胞占比不低于30%;置于1.5 mL或2.0 mL离心管中保存。
若用于cfDNA分析,需提供>15 ng cfDNA,片段分布良好,单核小体cfDNA占比≥50%;或提供1–4 mL血浆/血清,专用采血管采集。注意:cfDNA经亚硫酸盐处理后片段更短,建库成功率较低,仅推荐风险建库。
建议取幼嫩叶片等富含核酸部位,总量不少于300 mg;多酚或多糖类植物建议增加送样量或提前提取DNA;避免使用化学试剂保存,液氮速冻,-80℃储存。
提供不少于100 ng DNA,浓度≥2 ng/μL,基于Qubit定量。适用于低起始量研究,需特别注意纯度控制。
如唾液、尿液、灌洗液、拭子、分泌物等,请提前咨询技术支持确认是否适用及具体处理方法。
交付内容
标准分析
甲基化位点识别与基础统计:单碱基分辨率甲基化水平计算,全基因组及不同序列背景(CpG、CHG、CHH)甲基化水平分布,不同基因组元件(启动子、外显子、内含子、重复序列等)甲基化水平比较。
差异甲基化区域(DMR)鉴定
使用metilene、DSS 或 methylKit 等工具识别 DMR,DMR 基础统计(数量、长度、甲基化变化方向)。
功能富集分析
DMR 关联基因鉴定(基于最近 TSS 或重叠基因体),GO 生物过程与 KEGG 通路富集分析,印记基因与重复元件分析。
高级分析
多组比较与动态甲基化分析、多时间点/多处理组DMR 聚类、甲基化轨迹可视化。
整合多组学分析
与RNA-seq 联合分析:启动子甲基化 vs. 基因表达相关性、与ATAC-seq/ChIP-seq 整合、单等位甲基化分析、基于杂合SNP 位点分析亲本特异性甲基化(ASM)。
定制化可视化
IGV 浏览器截图(关键基因/ICR 区域)、Circos 图展示全基因组甲基化分布、曼哈顿图展示DMR 在染色体上的分布。
常见问题
针对特定缺陷(如印记丢失),可运用靶向表观遗传编辑技术精确修复位点甲基化,直接验证其功能影响。同时,基于WGBS揭示的甲基化酶表达变化,通过遗传学手段操控其活性,可深入探究调控机制。这些发现最终能指导培养体系优化,以获取表观遗传更完善的细胞模型。
甲基化与表达数据的矛盾常揭示复杂调控。可能原因包括:基因体甲基化与转录激活相关、等位基因特异性效应的掩盖,或甲基化通过三维基因组远距离调控其他基因。整合染色质构象数据与运用单细胞多组学技术,是厘清群体平均数据下异质性真相的关键。
