蛋白表达与检测
提供从高灵敏度检测到空间定位分析的全套方案,精准量化目标蛋白的表达水平。
BiFC
双分子荧光互补技术(Bimolecular Fluorescence Complementation, BiFC)是基于荧光蛋白片段重构原理,在活细胞内实时观察蛋白质间相互作用及亚细胞定位的分子生物学技术。该技术突破了传统体外互作检测(如 Pull-Down)无法反映细胞内生理环境的局限,可在原生质体、完整组织或活体植株中直接验证蛋白互作,兼具直观性强、特异性高、无需底物、可动态追踪的特点。BiFC 不仅能验证已知蛋白间的相互作用,还可揭示互作发生的亚细胞位置(如细胞核、细胞质、细胞膜),广泛应用于信号通路调控、蛋白复合物组装、基因表达调控等领域。相较于酵母双杂交(Y2H),BiFC 无需依赖报告基因激活,能更真实地模拟生物体内蛋白互作的天然条件,是细胞内蛋白互作研究中不可或缺的核心工具。
原理介绍
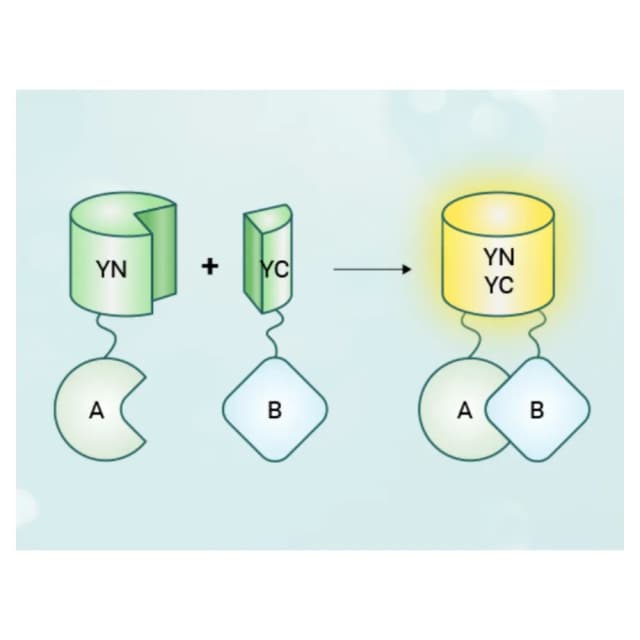
BiFC技术的原理基于荧光蛋白的片段互补特性。以最常用的黄色荧光蛋白变体Venus为例,其被精确切割为N端片段(YN,通常为第1-172位氨基酸)和C端片段(YC,通常为第155-238位氨基酸)。这两个片段单独表达时均无荧光。当将YN片段与蛋白A融合(表达为A-YN),YC片段与蛋白B融合(表达为B-YC),并共转染至活细胞中后,如果蛋白A与蛋白B发生特异性相互作用,便会将YN和YC两个片段拉至足够近的距离(通常\<10 nm)。在适宜的细胞环境下,这两个片段能够重新折叠、组装,形成与天然Venus蛋白高度相似的空间结构,恢复发出黄色荧光的能力。通过荧光显微镜直接观察荧光信号的出现及其在细胞内的位置,即可判断两个目标蛋白是否互作,以及互作发生的具体区域(如细胞核、细胞膜、细胞质等)。
文献案例
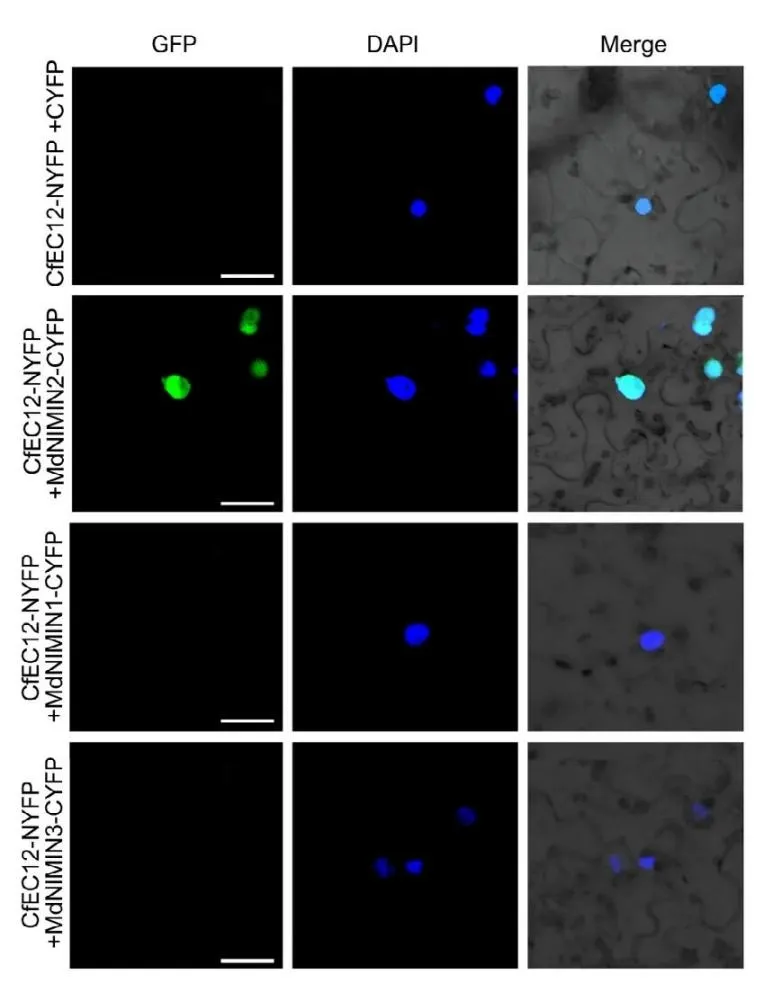
《Plant Biotechnology Journal》发表题为 “A fungal CFEM-containing effector targets NPR1 regulator NIMIN2 to suppress plant immunity” 的研究论文,该研究借助 BiFC 技术明确了真菌效应子 CfEC12 与植物免疫调控蛋白 MdNIMIN2 的互作关系及定位。为寻找 CfEC12 的互作蛋白,研究人员首先通过酵母双杂筛库筛选获得 11 个候选蛋白,经 Y2H 实验证实 MdNIMIN2 与 CfEC12 具有强烈相互作用。为进一步在活细胞内验证该互作,构建 CfEC12-NYFP(N 端 YFP 融合)和 MdNIMIN2-CYFP(C 端 YFP 融合)重组载体,将两种载体对应的农杆菌菌液按 1:1 比例混合后,瞬时转化烟草叶片。培养 48h 后,通过激光共聚焦显微镜观察发现,烟草叶片表皮细胞的细胞核中出现明显的 YFP 特异性荧光信号,而阴性对照(CfEC12-NYFP + 空 CYFP 载体、MdNIMIN2-CYFP + 空 NYFP 载体)未观察到荧光。这一结果直接证实 CfEC12 和 MdNIMIN2 可在植物细胞核内发生特异性相互作用,为后续阐明 CfEC12 通过靶向 MdNIMIN2 抑制植物免疫的分子机制奠定了关键基础。
送样标准
浓度≥500ng/μL,体积≥50μL,-20℃保存,冰袋运输;需附带测序报告及载体图谱
新鲜叶片 / 愈伤组织>1g / 份,4℃冷藏运输,24h 内送达;需注明植物品种及生长状态
细胞系需提供活力>90% 的冻存细胞,干冰运输;原生质体需新鲜制备,冰袋运输,12h 内送达;需注明细胞类型及培养条件
诱饵蛋白 / 猎物蛋白基因序列(FASTA 格式),需明确酶切位点及融合方向
交付内容
荧光观察原始数据
实验组与对照组的激光共聚焦显微镜照片、荧光信号强度定量数据、亚细胞定位分析图;
互作验证报告
明确蛋白间是否存在相互作用的结论,结合荧光信号分布确定互作发生的亚细胞位置;
技术支持文档
提供实验优化建议(如荧光片段选择、转化条件优化)、常见问题排查指南,以及后续验证实验(如 Co-IP、Pull-Down)的设计建议。
常见问题
①荧光片段自身存在自组装活性,更换无自聚合倾向的荧光蛋白片段(如改进型 Venus 片段);②载体构建过程中出现片段融合错误,重新测序验证载体序列,确保荧光片段与蛋白正确连接;③细胞自身荧光干扰,选择荧光背景更低的实验材料,或使用更长发射波长的荧光蛋白(如 mCherry);④降低融合蛋白表达量,更换弱启动子载体,避免蛋白过量表达导致的非特异性结合。
①优化荧光蛋白片段组合,选择重构效率更高的配对(如 SPYNE/SPYCE、YN155/YC155);②增加载体转染量,提高融合蛋白表达水平;③使用荧光增强剂,或在显微镜下延长曝光时间(避免过度曝光导致背景升高);④选择更灵敏的激光共聚焦显微镜,优化激发光强度和检测参数。
①使用纯化的重组融合蛋白进行体外 BiFC 重构实验,排除中间蛋白介导的间接互作;②构建蛋白截短体,明确关键互作结构域,若截短体仍能驱动荧光重构,证明两者存在直接互作;③结合体外 Pull-Down 实验,使用纯化蛋白验证直接结合,与 BiFC 结果相互印证。
